Bosrevue
De voorbije jaren werden onze bossen meermaals geconfronteerd met extreme weersomstandigheden. Niet alleen het afgelopen jaar was uitzonderlijk droog, ook de jaren 2017–2020 en 2022 werden gekenmerkt door uitgesproken droogteperiodes (VMM, 2025). Door de klimaatverandering zullen zulke droge omstandigheden niet enkel frequenter, maar ook intenser worden (IPCC, 2021). Daarbovenop zorgen stijgende temperaturen ervoor dat droogtes “heter” worden: hogere temperaturen verhogen de verdamping en dus de waterbehoefte van bomen, waardoor de impact van droogte verder toeneemt.
Die toenemende droogtestress vormt een van de grootste uitdagingen voor Europese bossen. Bomen schroeven hun groei terug, laten hun bladeren vallen en worden vatbaarder voor andere natuurlijke verstoringen zoals ziektes (Anderegg et al., 2015; Scharnweber et al., 2020; Sousa-Silva et al., 2018). Bij herhaalde of langdurige droogtestress kan de hydraulische structuur van bomen beschadigd geraken en kunnen bomen hun koolstofreserves uitputten, wat in extreme gevallen tot sterfte kan leiden (Chuste et al., 2020). De droogte van 2018 leidde tot droogtegerelateerde verstoringen in meer dan 1,5 miljoen hectare bos in Europa, ongeveer tien keer het totale Vlaamse bosareaal, en de gevolgen waren jaren later nog steeds merkbaar (Senf & Seidl, 2021).
Tegelijk zijn bossen essentieel voor onze samenleving door de ecosysteemdiensten die ze leveren. Ze produceren hout, slaan koolstof op en zorgen voor verkoeling tijdens warme dagen. De vraag is dus niet óf we ze moeten beschermen tegen klimaatextremen, maar hoe. Een voorgestelde oplossing om bomen weerbaarder te maken tegen droogte is sterker dunnen. Door bomen meer ruimte te geven, kan de beschikbaarheid van water voor individuele bomen toenemen en zou droogtestress afnemen, zo stellen verscheidene meta-analyses (Chagnon et al., 2025; Sohn et al., 2016). Maar deze studies focusten zich voornamelijk op Mediterrane naaldhoutbossen. Dus de vraagt is: werkt deze strategie ook in onze gematigde loofbossen? En wat betekent zo’n ingreep voor andere aspecten van het bosecosysteem, zoals het bosmicroklimaat en de fauna op de bosbodem? Is het mogelijk om zowel boomgroei als biodiversiteit te verbeteren, of moeten we onvermijdelijk afwegingen maken?
Meten is weten: van jaarringen tot insecten
Om deze vragen te beantwoorden, gingen we aan de slag in Meerdaalwoud en Zoniënwoud, beide deel van het Nationaal Park Brabantse Wouden. In overleg met de lokale boswachters selecteerden we 72 bomen, waarvan 35 zomereiken (Quercus robur) en 37 beuken (Fagus sylvatica), verspreid over bestanden met een uiteenlopende beheergeschiedenis (Figuur 1). Rond elke boom werd een cirkelvormig proefvlak met een straal van 18 m afgebakend, waarin verschillende structurele boseigenschappen werden geïnventariseerd. Binnen deze proefvlakken registreerden we onder andere de positie, de diameter en soort van alle bomen, alsook de openheid van het kronendak, de dikte van de strooisellaag en de totale hoeveelheid dood hout.
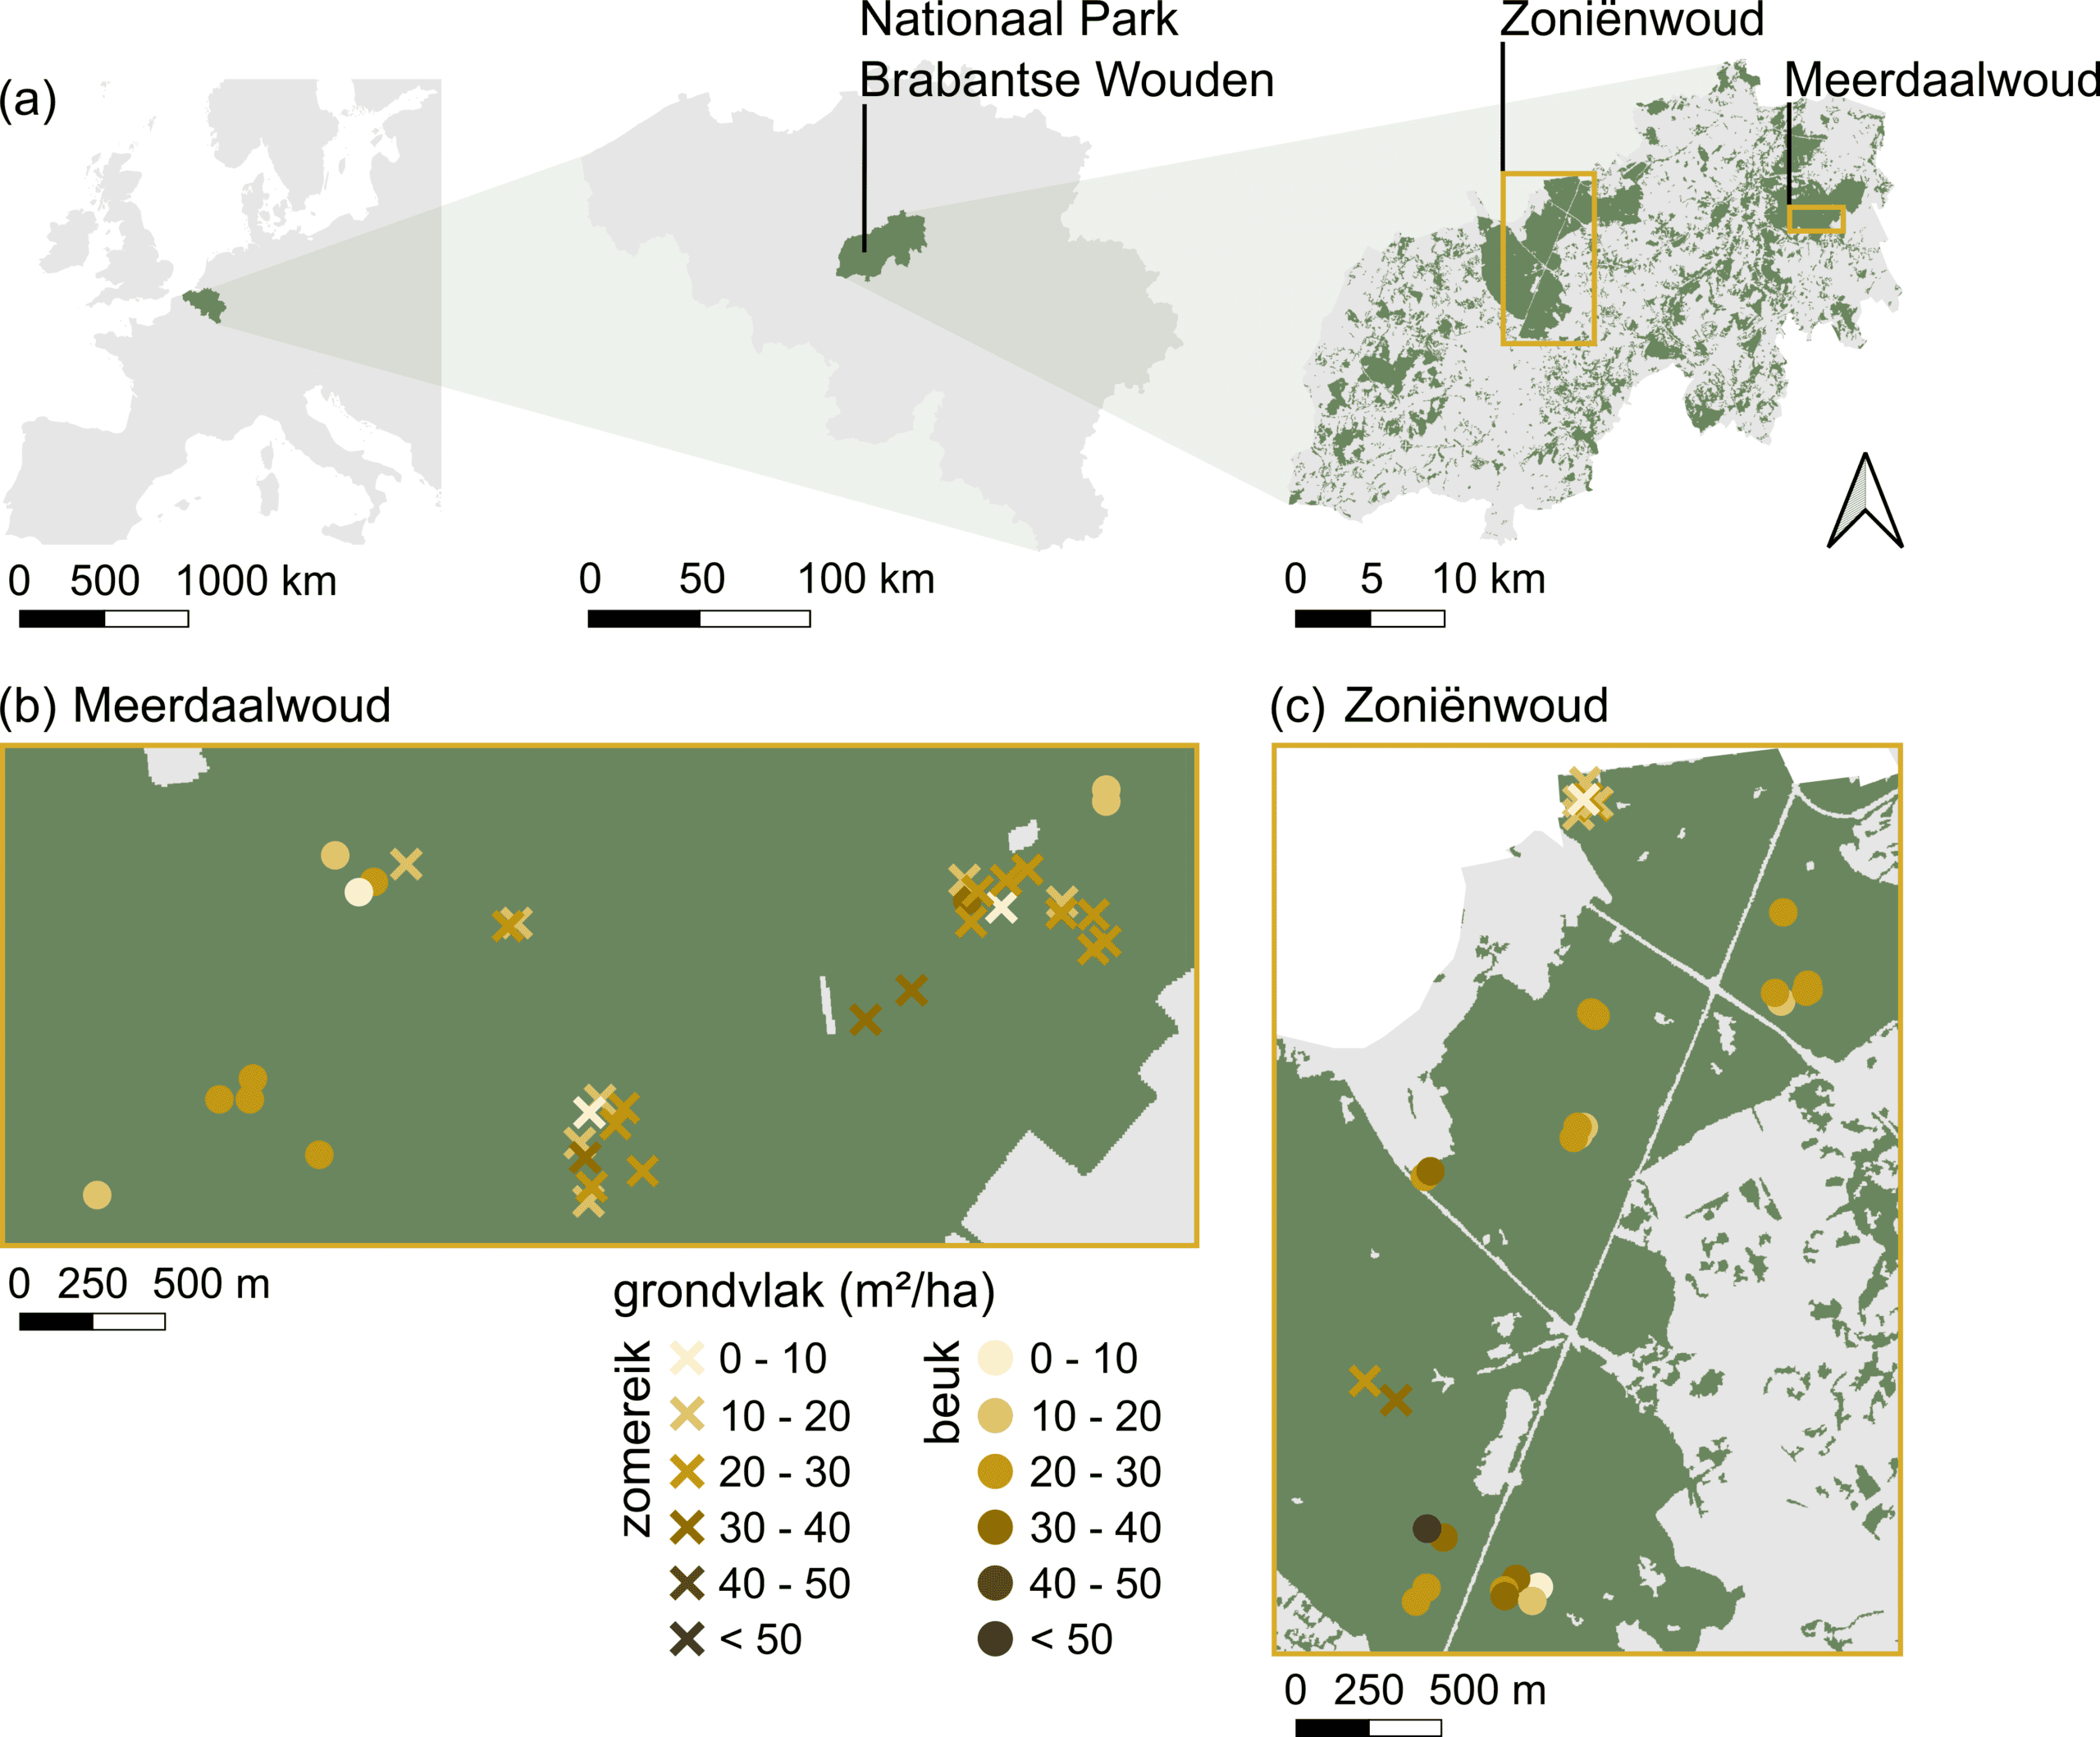
Figuur 1: Een overzichtskaart van het studiegebied. (a) Van links naar rechts tonen de kaarten de ligging van België binnen Europa, het werkingsgebied van het Nationaal Park Brabantse Wouden binnen België, en de locaties van (b) het Meerdaalwoud en (c) het Zoniënwoud binnen het Nationaal Park Brabantse Wouden. In deze twee boscomplexen werden in totaal 72 bomen geselecteerd langsheen een beheergradiënt (b,c), gaande van bosreservaten tot intensief beheerde bestanden. In het Meerdaalwoud werden 25 zomereiken en 11 beuken geselecteerd, in het Zoniënwoud 10 zomereiken en 26 beuken. De beheergradiënt wordt visueel weergegeven aan de hand van het grondlvak (m²/ha; situatie voorjaar 2022).
Om het effect van dunnen op onze bomen te analyseren, gebruikten we twee manieren om groei en droogtestress op te volgen. Eerst gingen we terug in de tijd via jaarringen. In gematigde bossen vormt een boom normaal één jaarring per jaar. Deze ring kan ons iets vertellen over de groeicondities tijdens dat jaar: smalle ringen wijzen op ongunstige omstandigheden zoals droogte (Spiecker, 2002). Deze data gaven ons inzicht in de groei en droogtestress over meerdere decennia. Vervolgens richtten we ons op het heden via dendrometers, die tijdens de groeiseizoenen van 2022 en 2023 elke vijftien minuten registreerden hoe de stamdiameter uitzet of krimpt (Figuur 2a). Overdag verliezen bomen water via transpiratie en krimpt de stam, terwijl ze ’s nachts hun waterreserves aanvullen en weer uitzetten (Zweifel et al., 2016). Door groei neemt de diameter van de stam toe. Blijft de diameter onder de laatst geregistreerde maximum diameter, dan wordt dit aanzien als een teken van droogtestress.
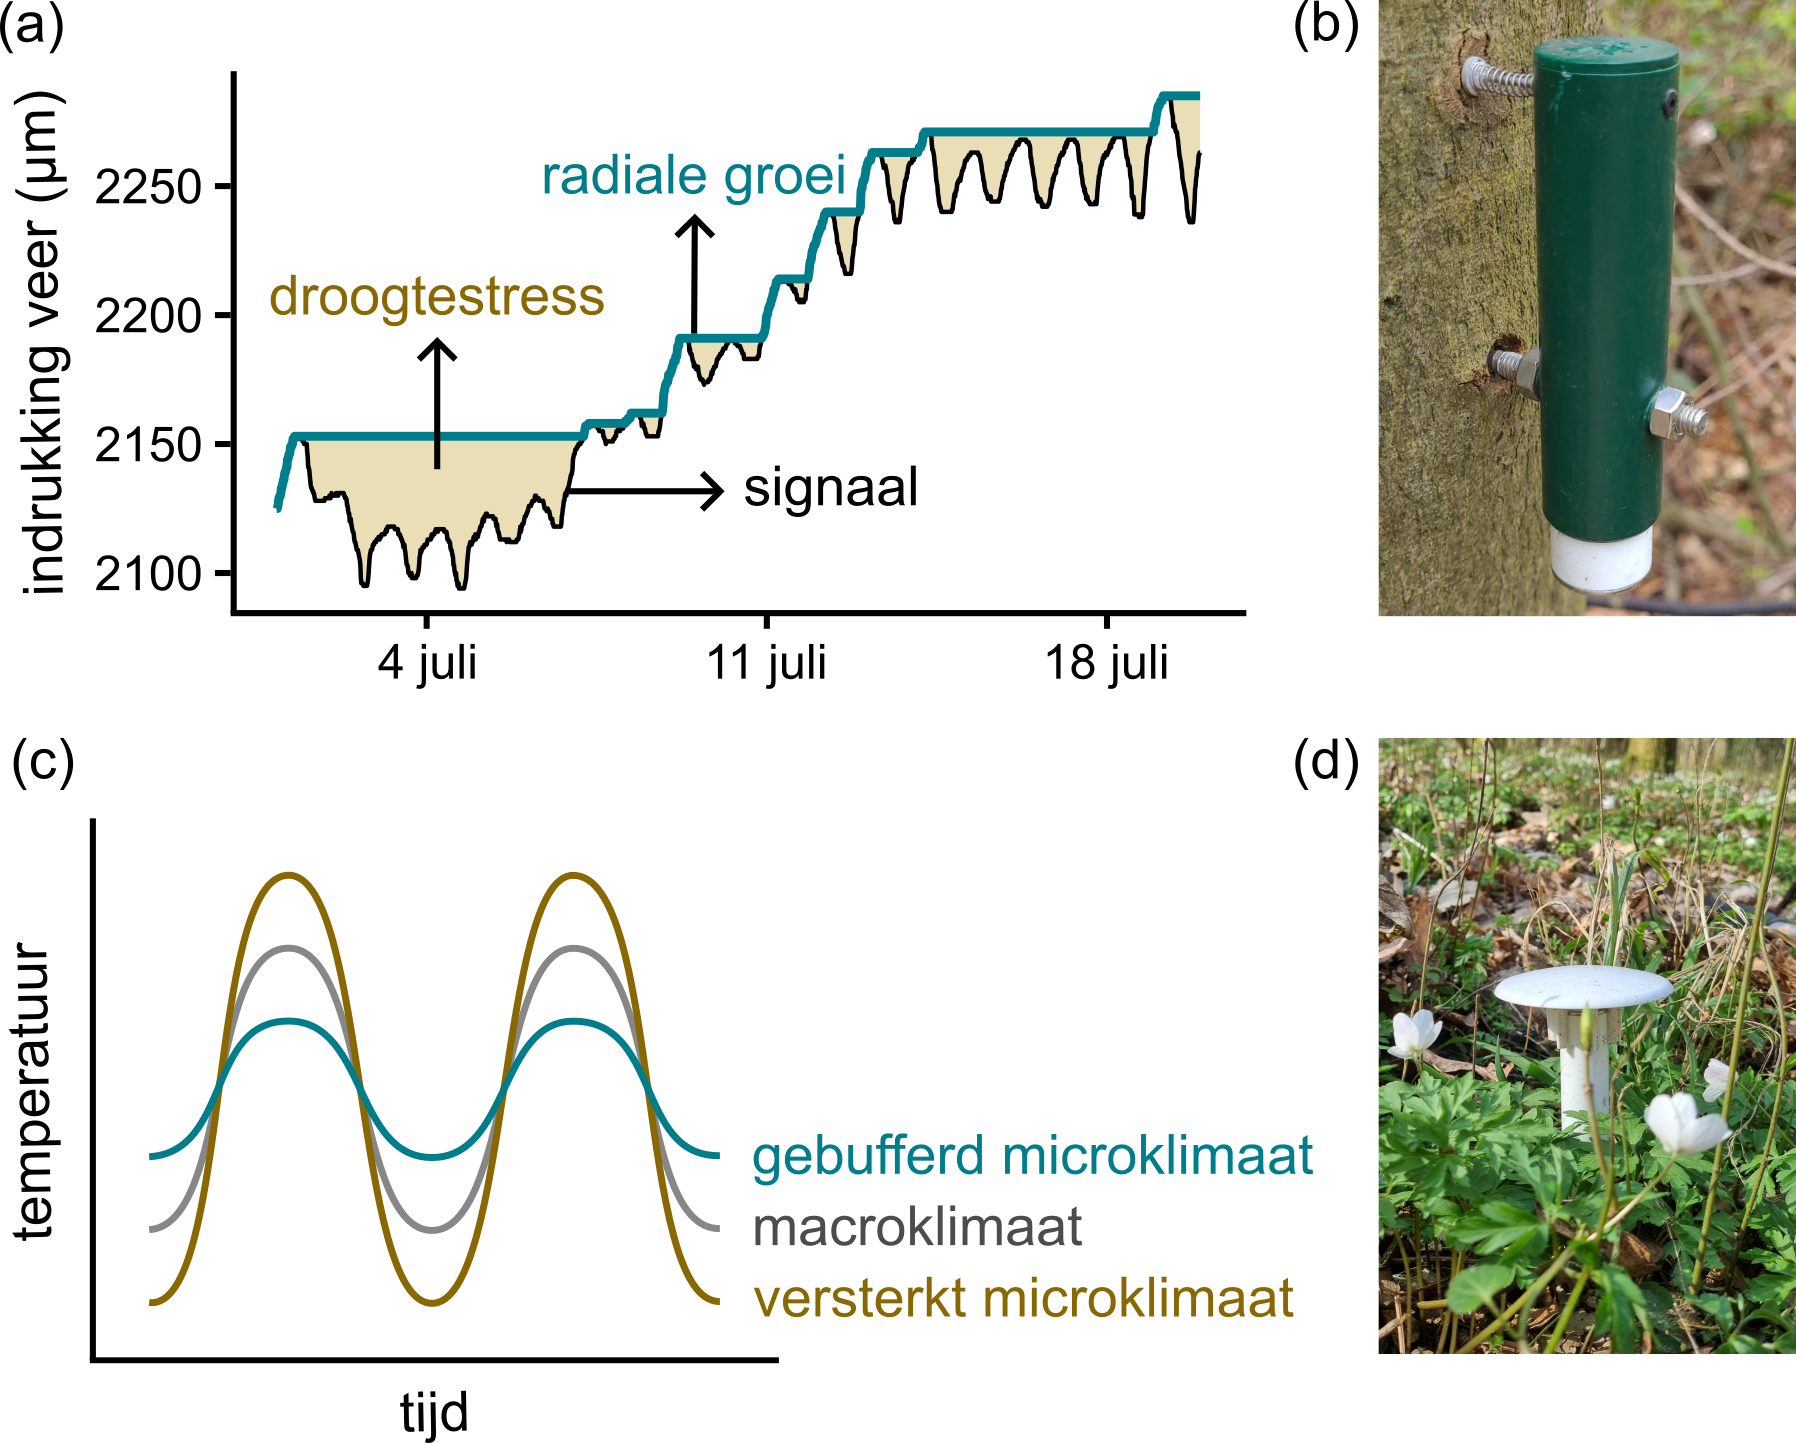
Figuur 2: Conceptuele illustraties van (a) boomgroei en droogtestress en (c) microklimaatbuffering. (a) Dendrometers meten veranderingen in de stamdiameter op zeer hoge tijdsresolutie (15 minuten). Het signaal toont het typische dagelijkse patroon van het krimpen (overdag, door watergebruik) en uitzetten (’s nachts, door wateropname) van een boomstam. Groei zorgt voor een toename in stamdiameter (blauwe lijn), terwijl diameterfluctuaties onder deze groeilijn wijzen op watertekort en droogtestress. (b) TOMST-dendrometer bevestigd op een beuk. (c) Bossen kunnen temperatuurschommelingen uit de omgeving bufferen (blauwe lijn) of versterken (gele lijn), in vergelijking met de macroklimaattemperatuur gemeten door een weerstation (grijze lijn), zowel op dagelijkse of jaarlijkse tijdschaal. (d) TOMST TMS4-microklimaatlogger.
Naast groei en droogtestress was er ook aandacht voor het effect van dunnen op het microklimaat en de biodiversiteit. In Meerdaalwoud installeerden we in elk proefvlak één microklimaatlogger (Figuur 2d) en twee bodemvallen. De loggers registreerden in 2022 en 2023 elk kwartier het bodemvocht en de temperatuur op de bosbodem, waarvan we een dagelijkse maximumtemperatuur en een dagelijks gemiddelde hoeveelheid bodemvocht berekenden. De bodemvallen dienden om loopkevers en pissebedden te vangen tijdens de zomer van 2022. Het aantal individuen per soort per vangst zegt ons iets over hun activiteit-densiteit, wat een gecombineerde maat is voor hoe actief een soort is en hoe dichtbevolkt ze zijn.
Gedunde bomen groeien beter, maar droogte blijft een uitdaging
Zowel de jaarringen als de dendrometerdata tonen een algemeen patroon: dunnen stimuleert de groei. Uit de jaarringanalyses blijkt dat de jaarlijkse grondvlaktoename stijgt naarmate het bos opener wordt, waarbij de hoogste absolute groei werd waargenomen bij 500 m³/ha staand volume (~30 m²/ha grondvlak) voor zowel eik als beuk (Figuur 3a-b). De dendrometerdata bevestigden het positieve effect van dunnen op groei voor beuk: dagelijkse groei nam toe wanneer de competitiesterkte tussen bomen afnam (Figuur 3c). Eik reageerde niet eenduidig op dunnen, waarschijnlijk omdat eikenbestanden in onze studie al relatief open waren en minder variatie in competitiedruk vertoonden dan beukenbestanden. Over het algemeen suggereren deze resultaten dat dunnen de productiviteit van individuele bomen kan verhogen. Een belangrijke kanttekening is echter dat een hogere diametergroei per boom niet noodzakelijk leidt tot een hogere totale houtproductie op bestandsniveau; deze kan bij (sterke) dunning zelfs afnemen (Pretzsch, 2020). De winst zit vooral in het sneller bereiken van doeldiameters en dus in de productie van dikke, waardevolle stammen. De gekozen dunningsintensiteit moet daarom afgestemd worden op het beoogde beheerdoel: maximale houtopbrengst versus de productie van stammen met grote dimensies.
De relatie tussen dunnen en droogtestress was minder eenduidig. De stabiliteit van de jaarlijkse groei t.a.v. droogte, ook wel het vermogen van een boom om zijn groei te behouden of te herstellen tijdens of na een droogte, werd niet beïnvloed door dunningsintensiteit (niet getoond). Wel zagen we in de jaarringanalyses dat de helling van de relatie tussen jaarlijkse groei en droogte afnam in meer open bestanden, wat wijst op een lagere droogtegevoeligheid (Figuur 3a-b), al was dit effect niet consistent en afhankelijk van de geanalyseerde tijdsperiode. De dendrometerdata gaven een meer gedetailleerd beeld (zie ook het bosrevue artikel van Geussens (2025)). Beuken in dichte bestanden (hoge competitiedruk) waren meer onderhevig aan droogtestress dan in gedunde bestanden (Figuur 3d). Echter bij zeer sterke dunningen (lage competitiedruk) nam de stress opnieuw toe (Figuur 3d). Dit fenomeen wordt verklaard doordat dunnen enerzijds de competitie voor water verlaagt, maar anderzijds de individuele watervraag van bomen kan verhogen: door het openen van een bosbestand neemt de instraling toe en warmt het bos lokaal op, wat leidt tot een stijging in de verdampingsvraag. Bovendien ontwikkelen bomen met meer ruimte grotere kronen, wat hun watergebruik verhoogt. Een matig gedund bos (met een grondvlak van ongeveer 30–35 m²/ha) leek voor beuk de beste balans te bieden: voldoende licht en ruimte om groei te stimuleren zonder droogtestress te verhogen. Bij eik vonden we geen duidelijk effect van dunnen op droogtestress, mogelijks door de beperkte competitiegradiënt en doordat eik robuuster is tegen droogte dan beuk (Meyer et al., 2020).
Kort samengevat: dunnen verbetert de groei van individuele bomen, maar is geen wondermiddel om droogtestress te gaan verlagen. Overmatig dunnen kan droogtestress zelfs gaan versterken. Daarom raden we een matig gedund bos aan met een grondvlak van ongeveer 30-35 m²/ha voor beuk. Eik verdraagt meer opener structuren (Geussens, 2025).
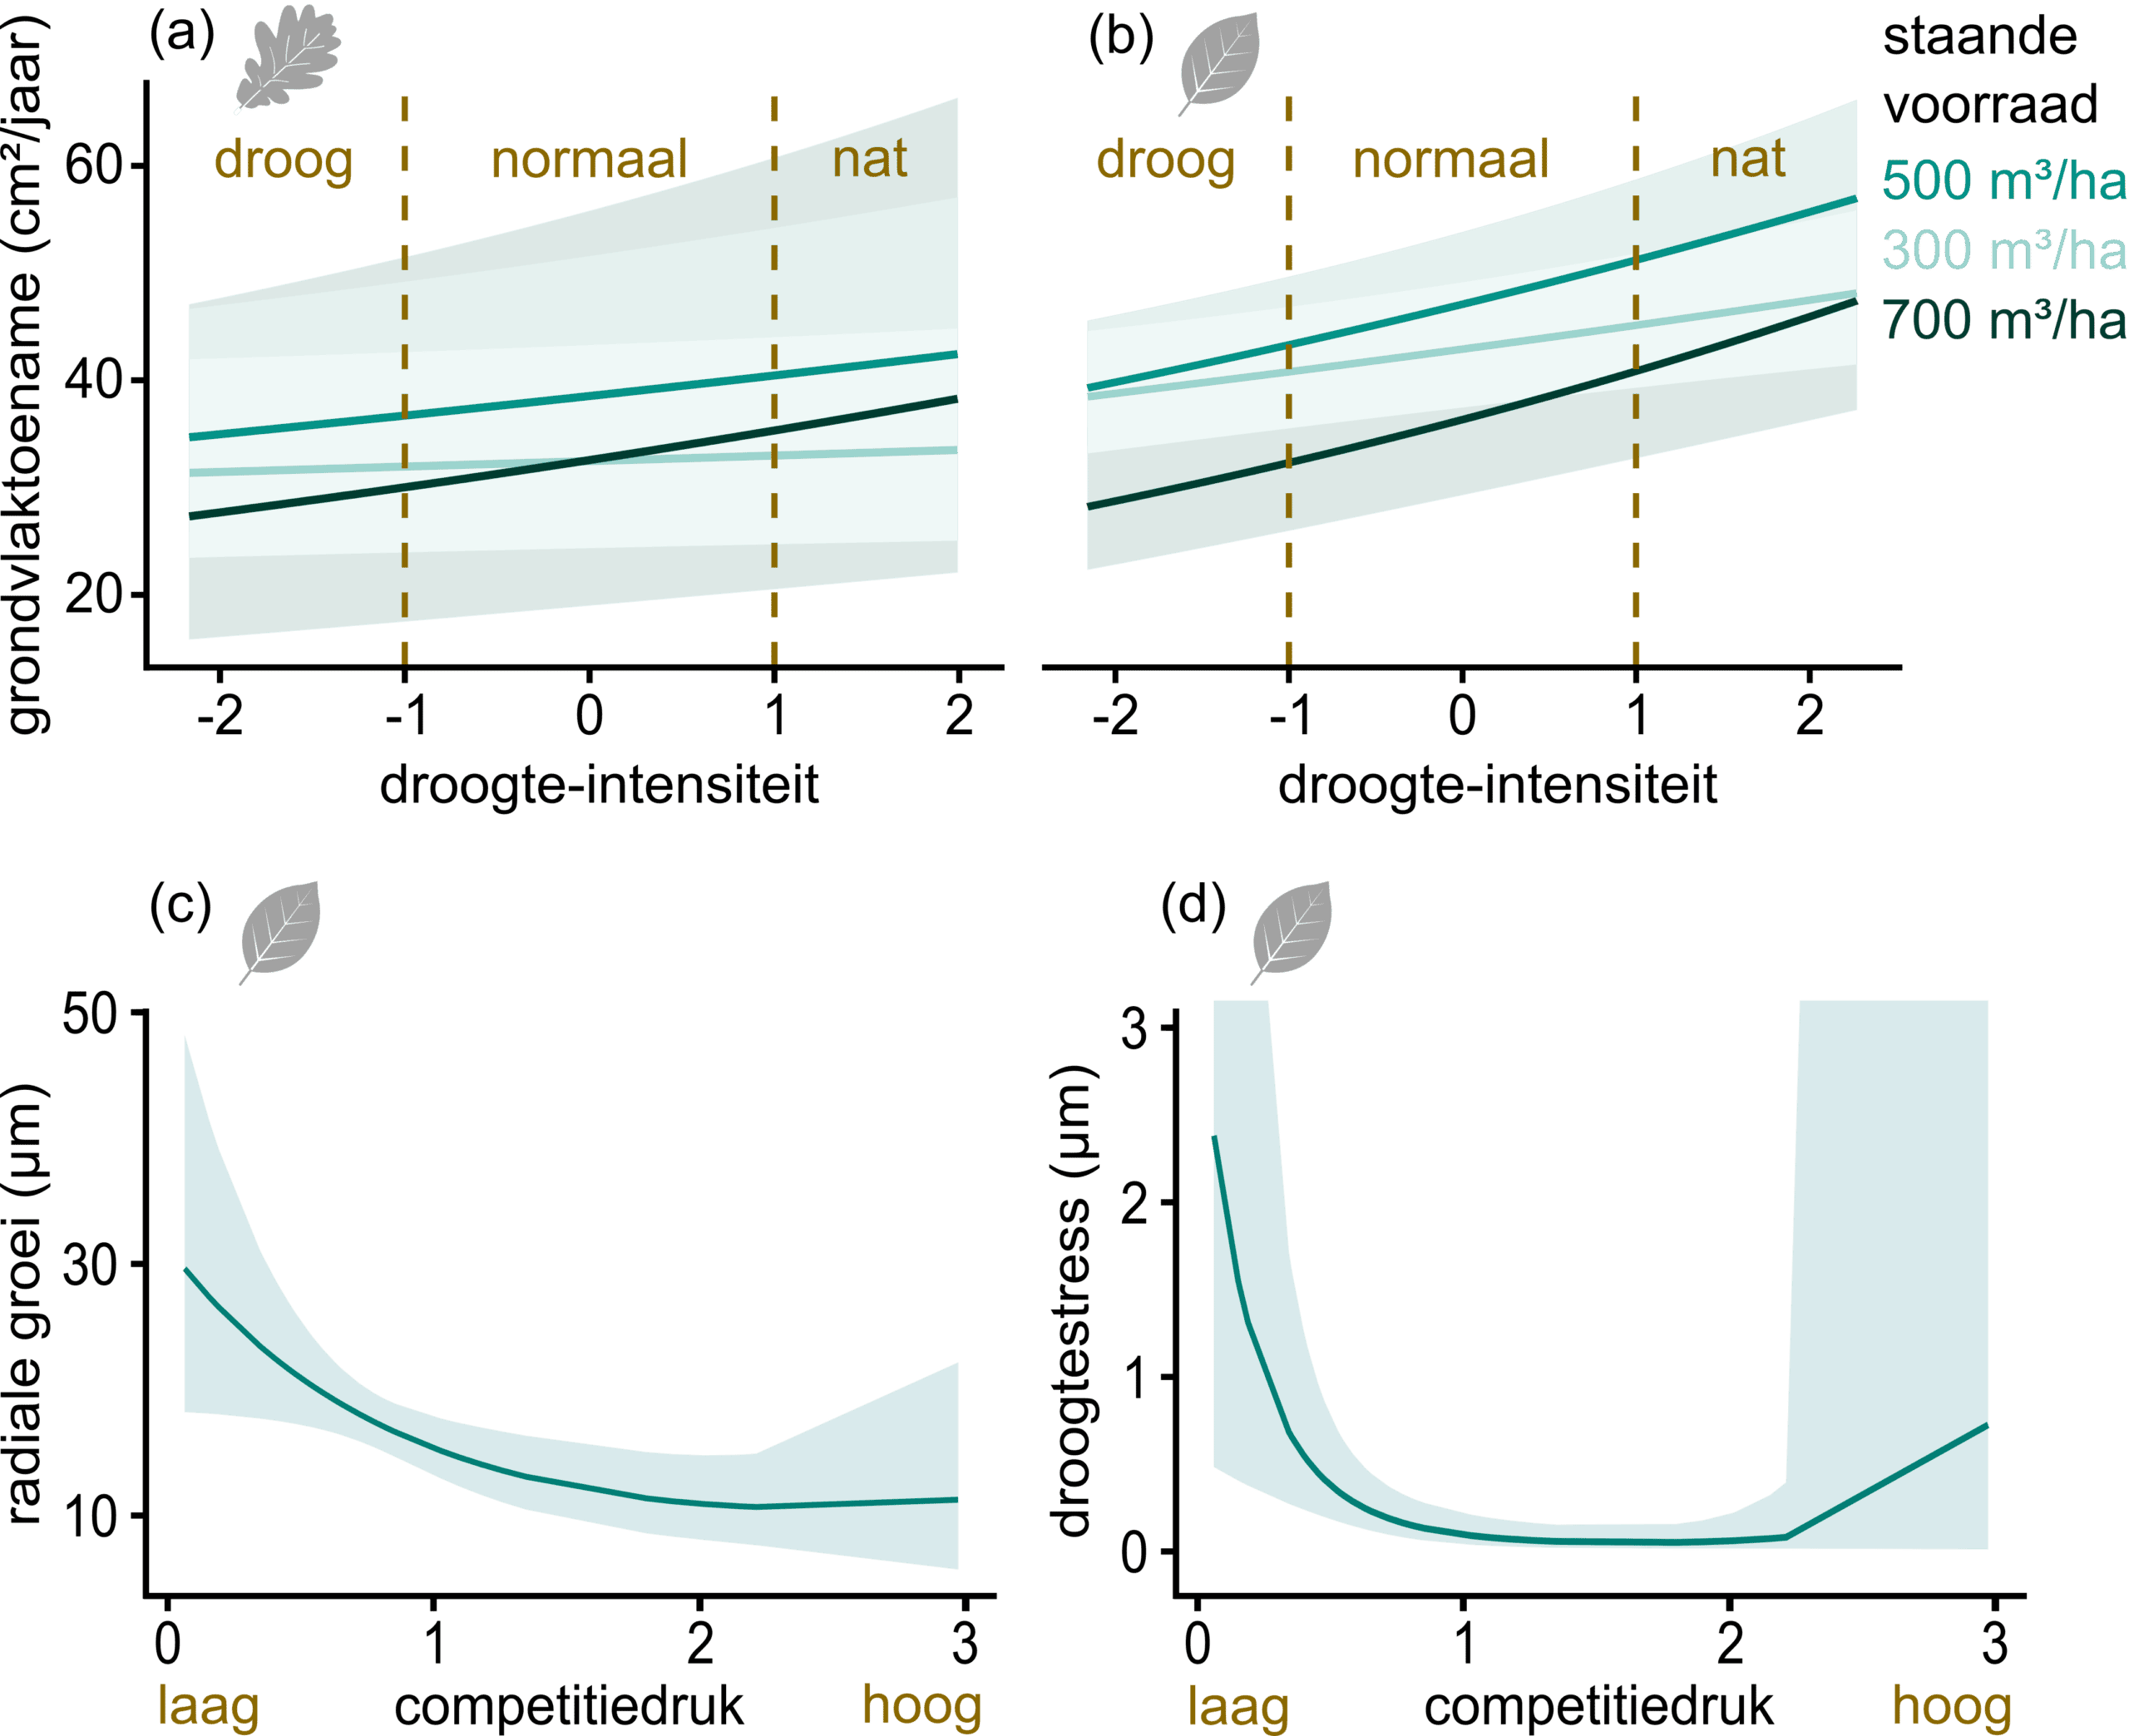
Figuur 3: Effect van dunnen op boomgroei en droogtestress in (a) eik en (b,c,d) beuk. (a,b) De jaarlijkse grondvlaktoename (cm²/jaar) wordt beïnvloed door droogte-intensiteit, berekend met de genormaliseerde neerslag-evapotranspiratie-index (SPEI), die de waterbalans weerspiegelt. Waarden onder -1 geven aan dat het droger is dan normaal. (c,d) De dagelijkse radiale groei en droogtestress, respectievelijk, worden weergegeven in functie van de competitiedruk, berekend met de Hegyi-competitie-index op basis van boomdiameters en onderlinge afstanden. Hoe hoger de index, hoe sterker de competitie tussen bomen.
Open kronendaken warmen het bos op
Bosbeheer beïnvloedt niet alleen bomen, maar ook het microklimaat net boven en in de bosbodem. Een gesloten kroon werkt als een natuurlijke buffer tegen temperatuurextremen: overdag blijft het er koeler, terwijl ’s nachts de warmte wordt vastgehouden (Figuur 2). Wanneer het kronendak geopend wordt door dunningen of natuurlijke verstoringen, neemt het bufferend vermogen echter af en stijgen de maximumtemperaturen lokaal (Figuur 4). Bossen met een kroonbedekking onder de 50 à 60% verliezen hun bufferend werking zelfs volledig, waardoor temperatuurextremen zelfs versterkt kunnen worden in vergelijking met de temperatuur gemeten in een weerstation.
Bodemvocht, daarentegen, heeft wel baat bij meer open bosstructuren: het gemiddelde bodemvochtgehalte was hoger in minder dichte bestanden (Figuur 4), doordat minder neerslag door het kronendak wordt onderschept en de totale evapotranspiratie lager is in gedunde bossen (Belmonte et al., 2022). Vochtige bodems zijn belangrijk om het koele bosmicroklimaat te behouden (Greiser et al., 2024; Verdonck et al., 2025), doordat ze trager opwarmen en voor extra verkoeling zorgen via verdamping. Daarnaast vonden we dat bomen die goed groeiden en weinig stress ervaarden eveneens microklimaattemperaturen laten dalen door transpiratie. Toch wogen de verkoelende effecten van een nattere bodem en betere groei in sterker gedunde bestanden niet op tegen de directe opwarming door opening van het kronendak. Een gesloten kronendak blijft dus essentieel om temperatuurextremen te bufferen. Bosbeheer moet grote gaten vermijden en zorgen voor een snelle kroonsluiting na een interventie om het bosmicroklimaat te behouden.
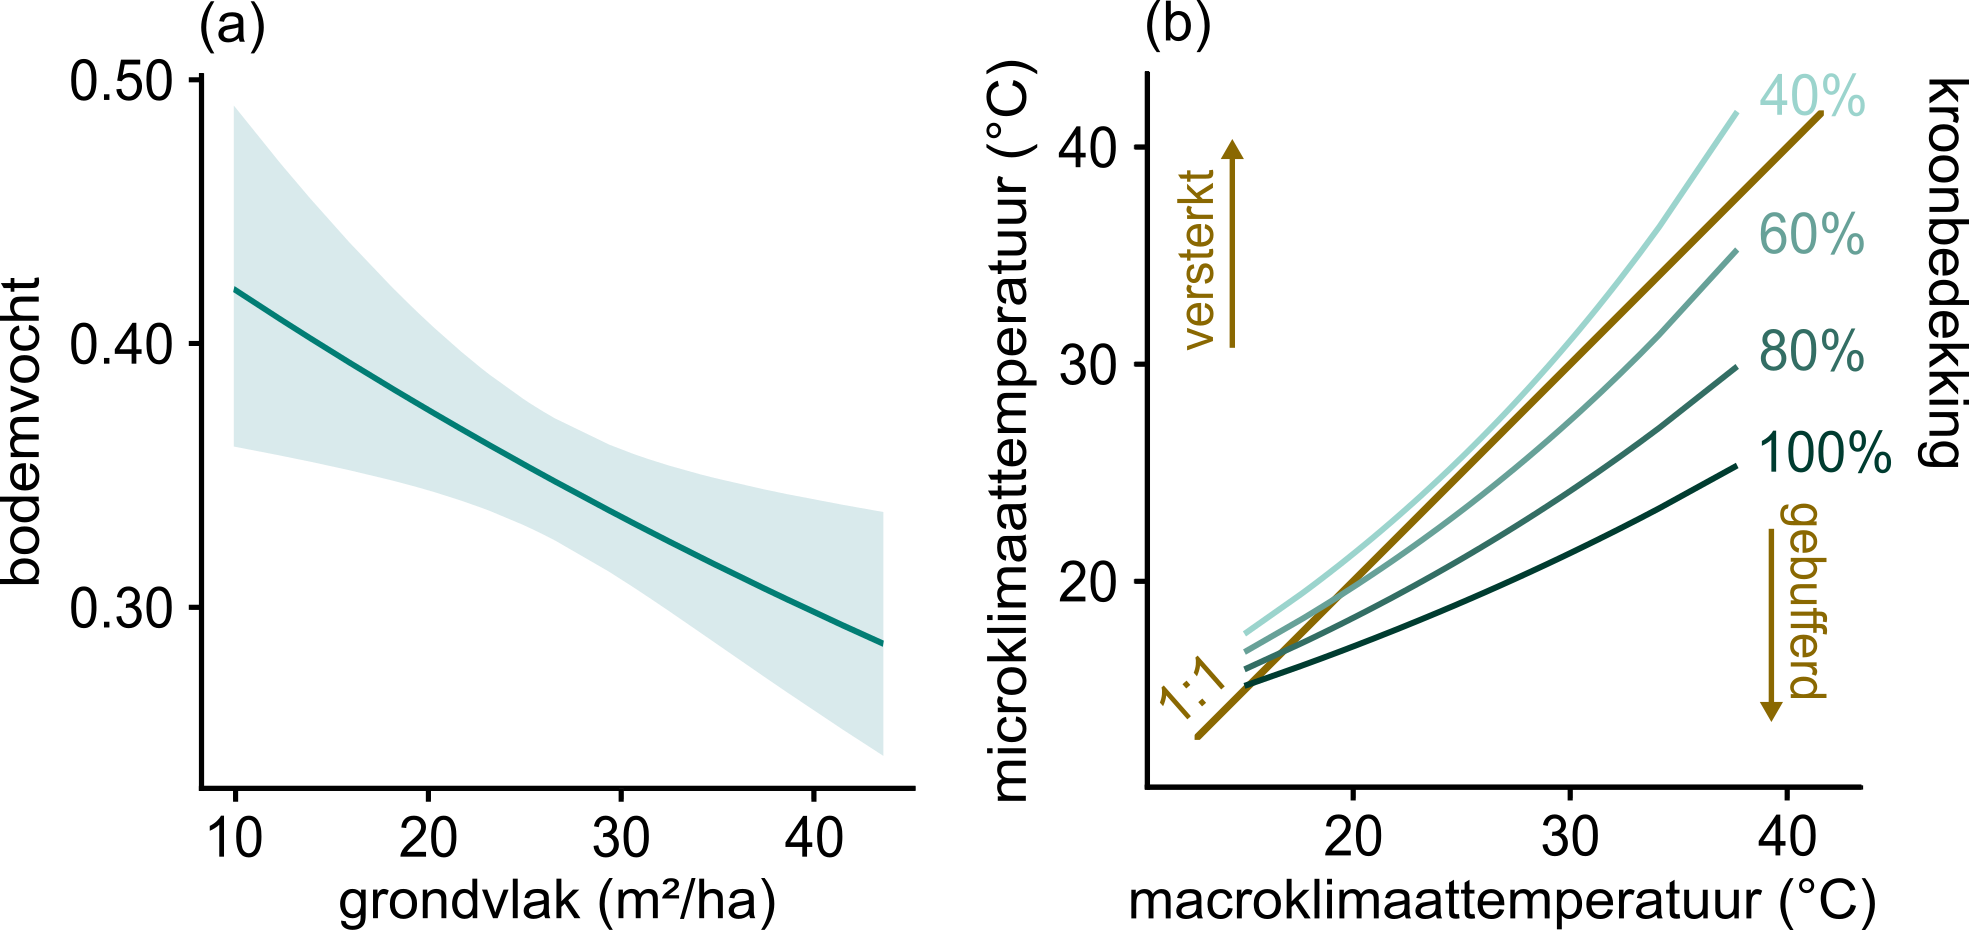
Figuur 4: Effect van dunnen op microklimaat. (a) Het dagelijks gemiddelde bodemvochtgehalte neemt af naarmate het grondvlak toeneemt. (b) De dagelijkse maximum temperaturen van het macroklimaat en het microklimaat worden tegenover elkaar uitgezet, rekening houdend met de kroonbedekking. De 1:1-lijn geeft weer wanneer de temperatuur van het microklimaat gelijk is aan die van het macroklimaat en ze dus perfect gekoppeld zijn. Wanneer de kroonbedekking de 50 à 60% nadert, worden temperaturen niet langer gebufferd maar versterkt.
Bodemfauna reageert op veranderingen in bosstructuur en microklimaat
Bodemfauna reageerde opvallend verschillend op bosstructuur en microklimaat. Pissebedden, die gevoelig zijn voor uitdroging, profiteerden van warmere omstandigheden gelinkt aan meer open bossen, maar enkel wanneer het bodemvocht voldoende hoog bleef (Figuur 5). Bij lage vochtwaarden namen zowel aantallen als soortenrijkdom af bij toenemende temperaturen. In tijden van droogte, lijkt er dus een voorkeur voor gesloten bossen. Loopkevers vertoonden een ander patroon. In open bestanden namen zowel hun aantallen als soortenrijkdom toe. Ze vermeden echter bossen waar de maximale temperatuur gemiddeld gezien altijd hoger was (Figuur 5), wat opnieuw een dualiteit tussen open en gesloten bosstructuren aangeeft. Daarnaast bleken soorteigenschappen zeer belangrijk te zijn: grotere soorten van zowel de pissebedden als de loopkevers konden beter overleven tijdens de droge zomer van 2022. Dit geeft aan dit verschillende soorten andere niches nodig hebben.
De algemene conclusie is duidelijk: soortenrijkdom is gebaat bij variatie. Geen enkele bosstructuur is optimaal voor alle soorten. Er is nood aan een mozaïek van open en gesloten plekken zodat elke soort zijn niche kan terugvinden.
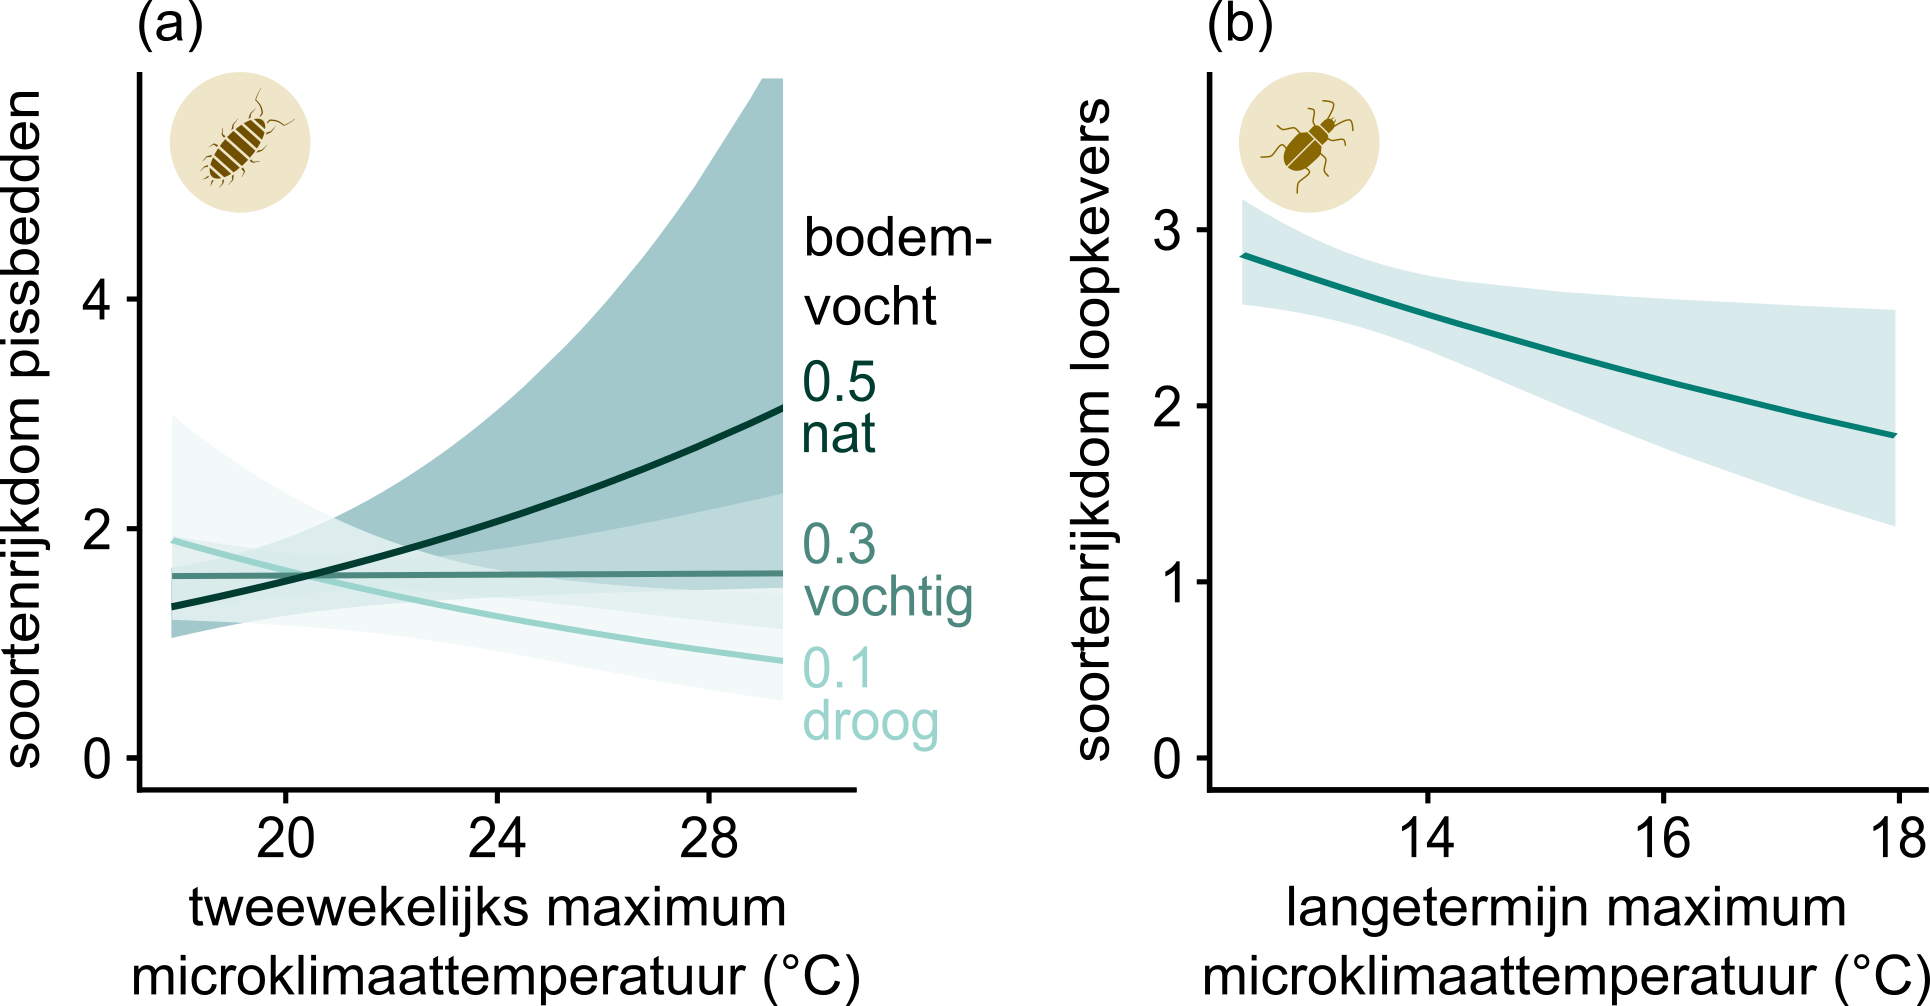
Figuur 5: Effect van microklimaat op de bosbodemfauna. (a) Het aantal soorten pissebedden wordt beïnvloed door de gemiddelde maximum microklimaattemperatuur tussen twee vangsten (tweewekelijks). Deze relatie is afhankelijk van het bodemvocht. Wanneer het droog is, zijn hoge temperaturen nefast voor pissebedden. (b) Het aantal soorten loopkevers wordt beïnvloed door de gemiddelde maximum microklimaat-temperatuur gedurende 2022 en 2023 (langetermijn). Locaties die over het algemeen warmer zijn hebben minder soorten loopkevers.
Op weg naar weerbare bossen: beheren voor een veranderend klimaat
Wanneer we de resultaten naast elkaar leggen, wordt duidelijk dat er geen eenvoudig recept bestaat dat tegelijk groei, microklimaat én biodiversiteit optimaliseert. Een beheer dat enkel inzet op groei kan onbedoeld het microklimaat schaden. Tegelijkertijd reageren verschillende soorten bodemfauna anders op bosstructuur en microklimaat. Onze resultaten wijzen er dus op dat variatie in bosstructuur nodig is om verschillende beheerdoelen en ecologische functies met elkaar te combineren, dit aan de hand van een mozaïek aan beheerintensiteiten doorheen het landschap. Vanuit deze bevindingen formuleren we enkele aanknopingspunten voor een beheerstrategie in Vlaamse loofbossen.
1) Baken zones af voor microklimaatbehoud en -ontwikkeling
Zones waar men wil inzetten op een microklimaat moeten ruimtelijk afgebakend worden. Dit kunnen bestaande bosreservaten zijn, waar reeds een goed gebufferd microklimaat aanwezig is, maar ook gebieden waar soorten voorkomen die sterk afhankelijk zijn van het bosmicroklimaat. Daarnaast kunnen zones aangewezen worden waar microklimaatbuffering versterkt kan worden. Hiervoor kan men kijken naar eigenschappen die de buffering van het microklimaat bevorderen en niet snel door klimaatverandering worden beïnvloed, zoals topografie waarbij noordhellingen koeler blijven dan zuidhellingen. Rond de zones voor microklimaatbehoud en -ontwikkeling, wordt een buffer van minstens 50 m aanbevolen om randeffecten van beheer of bosranden te beperken. Binnen deze zones wordt dunnen vermeden of beperkt tot kleinschalige ingrepen, en wordt waar mogelijk snelle kroonsluiting nagestreefd. Kroonsluitingen van minder dan 60% resulteren in de amplificatie van temperatuurextremen en dienen vermeden te worden.
2) Diversifieer dunningsintensiteiten
Buiten de microklimaatbehoudszones kan dunningsintensiteit gediversifieerd worden om een waaier aan beheerdoelen te realiseren, zoals houtproductie of specifieke habitatdoelstellingen. Zorg voor ruimtelijke variatie zowel op lokaal als op landschapsniveau. Op lokaal niveau kunnen individuele bomen worden verwijderd om microhabitats te creëren, terwijl op landschapsschaal open en gesloten bestanden elkaar kunnen afwisselen. Probeer over het algemeen minstens 60% kronensluiting te behouden om temperatuurextremen niet te versterken. Denk ook kritisch na over waar (nieuwe) gaten of open plekken worden aangelegd. Dit kan namelijk decennialang een invloed hebben op de lokale soortgemeenschappen (Pohl et al., 2007) en blijvende ecologische effecten creëren.
3) Versterk habitatconnectiviteit
De diverse reacties van bodemfauna op bosstructuur en microklimaat tonen dat soorten baat hebben bij verschillende leefomstandigheden. Door de dunningsintensiteiten te variëren op meerdere ruimtelijke schalen wordt reeds ingezet op habitatdiversiteit. Het is echter belangrijk om daarbij ook oog te hebben voor connectiviteit: verbindt gelijkaardige en geschikte habitats waar mogelijk met elkaar. Denk hierbij aan stepping stones of corridors doorheen minder gunstige omgevingen. Zo kunnen soorten zich verplaatsen naargelang hun noden, een flexibiliteit die belangrijker wordt in tijden van klimaatverandering met toenemende extremen.
Dunnen kan een waardevol instrument zijn in het streven naar weerbare bossen, maar enkel wanneer het met nuance en oog voor samenhang wordt toegepast. Bosbeheer draait niet om een keuze tussen bomen of bodemfauna, tussen groei of een gebufferd microklimaat, maar om het vinden van een balans tussen de vele elementen die samen een bos vormen. Onze resultaten tonen dat zelfs kleine verschillen in structuur grote gevolgen kunnen hebben voor de bosdynamiek. Een beheer dat inzet op variatie wapent bossen tegen de onzekerheden en extremen van een veranderend klimaat.
Gelieve als volgt te citeren:
Sanne Verdonck, Koenraad Van Meerbeek, Arno Thomaes, Bart Muys(2026) Hoe open is te open? Wat dunnen betekent voor bomen, het bosmicroklimaat en bodemfauna. Bosrevue 126a.
ISSN 2565-6953 – Bosrevue 126a
-
Referenties
Anderegg, W. R. L., Schwalm, C., Biondi, F., Camarero, J. J., Koch, G., Litvak, M., Ogle, K., Shaw, J. D., Shevliakova, E., Williams, A. P., Wolf, A., Ziaco, E., & Pacala, S. (2015). Pervasive drought legacies in forest ecosystems and their implications for carbon cycle models. Science, 349(6247), 528–532. https://doi.org/10.1126/science.aab1833
Chagnon, C., Dumont, S., Morin-Bernard, A., Jactel, H., Achim, A., & Moreau, G. (2025). Potential of thinning to increase forest resilience and resistance to drought, pest, windstorm and fire: A meta-analysis. Forest Ecology and Management, 590, 122788. https://doi.org/10.1016/J.FORECO.2025.122788
Chuste, P. A., Maillard, P., Bréda, N., Levillain, J., Thirion, E., Wortemann, R., & Massonnet, C. (2020). Sacrificing growth and maintaining a dynamic carbohydrate storage are key processes for promoting beech survival under prolonged drought conditions. Trees – Structure and Function, 34(2), 381–394. https://doi.org/10.1007/S00468-019-01923-5
Geussens, A. (2025). Dunnen of niet dunnen? De effecten van bosbeheer op droogtestress bij zomereiken en beuken – BOS+. Bosrevue, 121a. https://bosplus.be/bosrevue/dunnen-of-niet-dunnen-de-effecten-van-bosbeheer-op-droogtestress-bij-zomereiken-en-beuken/
Greiser, C., Hederová, L., Vico, G., Wild, J., Macek, M., & Kopecký, M. (2024). Higher soil moisture increases microclimate temperature buffering in temperate broadleaf forests. Agricultural and Forest Meteorology, 345, 109828. https://doi.org/10.1016/j.agrformet.2023.109828
IPCC. (2021). Summary for Policymakers. Contribution of Working Group I to the Sixth Assessment Report of the Intergovernmental Panel on Climate Change. In V. Masson-Delmotte, P. Zhai, A. Pirani, S. L. Connors, C. Péan, S. Berger, N. Caud, Y. Chen, L. Goldfarb, M. I. Gomis, M. Huang, K. Leitzell, E. Lonnoy, J. B. R. Matthews, T. K. Maycock, T. Waterfield, O. Yelekçi, R. Yu, & B. Zhou (Eds.), Climate Change 2021: The Physical Science Basis: Vol. AR6 WGI. Cambridge University Press. https://doi.org/https://doi.org/10.1017/9781009157896.001
Meyer, B. F., Buras, A., Rammig, A., & Zang, C. S. (2020). Higher susceptibility of beech to drought in comparison to oak. Dendrochronologia, 64, 125780. https://doi.org/10.1016/j.dendro.2020.125780
Pohl, G. R., Langor, D. W., & Spence, J. R. (2007). Rove beetles and ground beetles (Coleoptera: Staphylinidae, Carabidae) as indicators of harvest and regeneration practices in western Canadian foothills forests. Biological Conservation, 137(2), 294–307. https://doi.org/10.1016/J.BIOCON.2007.02.011
Pretzsch, H. (2020). Density and growth of forest stands revisited. Effect of the temporal scale of observation, site quality, and thinning. Forest Ecology and Management, 460, 117879. https://doi.org/10.1016/j.foreco.2020.117879
Scharnweber, T., Smiljanic, M., Cruz-García, R., Manthey, M., & Wilmking, M. (2020). Tree growth at the end of the 21st century – the extreme years 2018/19 as template for future growth conditions. Environmental Research Letters, 15(7), 074022. https://doi.org/10.1088/1748-9326/AB865D
Senf, C., & Seidl, R. (2021). Persistent impacts of the 2018 drought on forest disturbance regimes in Europe. Biogeosciences, 18(18), 5223–5230. https://doi.org/10.5194/bg-18-5223-2021
Sohn, J. A., Saha, S., & Bauhus, J. (2016). Potential of forest thinning to mitigate drought stress: A meta-analysis. Forest Ecology and Management, 380, 261–273. https://doi.org/10.1016/j.foreco.2016.07.046
Sousa-Silva, R., Verheyen, K., Ponette, Q., Bay, E., Sioen, G., Titeux, H., Van de Peer, T., Van Meerbeek, K., & Muys, B. (2018). Tree diversity mitigates defoliation after a drought-induced tipping point. Global Change Biology, 24(9), 4304–4315. https://doi.org/10.1111/GCB.14326
Spiecker, H. (2002). Tree rings and forest management in Europe. Dendrochronologia, 20(1–2), 191–202. https://doi.org/10.1078/1125-7865-00016
Verdonck, S., De Win, Y., Nutter, T., Koenraad, |, Meerbeek, V., Thomaes, A., Pallieter, |, Smedt, D., Dekoninck, W., Hendrickx, F., & Muys, | Bart. (2025). Managing canopy cover to preserve forest microclimate and diverse macroarthropod communities in times of drought. Journal of Applied Ecology, 00, 1–12. https://doi.org/10.1111/1365-2664.70137
VMM. (2025). Droogte. https://vmm.vlaanderen.be/feiten-cijfers/klimaat/klimaatthemas/droogte
Zweifel, R., Haeni, M., Buchmann, N., & Eugster, W. (2016). Are trees able to grow in periods of stem shrinkage? New Phytologist, 211(3), 839–849. https://doi.org/10.1111/nph.13995
Samenvatting voor bosbeheerders PhD Sanne Verdonck